Dalla definizione “in negativo” di Thomas Rivers (1932) alle riformulazioni di André Lwoff (1953–1957) e alle analisi storiche di Ton van Helvoort e William Summers, una ricostruzione critica delle incertezze concettuali e delle difficoltà metodologiche che hanno segnato un secolo di virologia.
Tra filtri, colture, “preparati” e concetti che cambiano: come e perché la categoria “virus” è stata inventata, discussa e continuamente reinventata, dal laboratorio alla pagina dei manuali.
Che cos’è un virus? La domanda sembra disarmante nella sua semplicità, ma chi mette le mani dentro la storia della virologia scopre presto che, per una lunga parte del Novecento, una definizione univoca, solida e condivisa non c’era. Il termine “virus” funzionava spesso da etichetta provvisoria per qualcosa che sfuggiva agli strumenti della batteriologia: più piccolo dei batteri noti, non visibile al microscopio ottico, non coltivabile su mezzi inerti. Il risultato era una definizione per sottrazione, per ciò che un virus non era, più che per ciò che era.
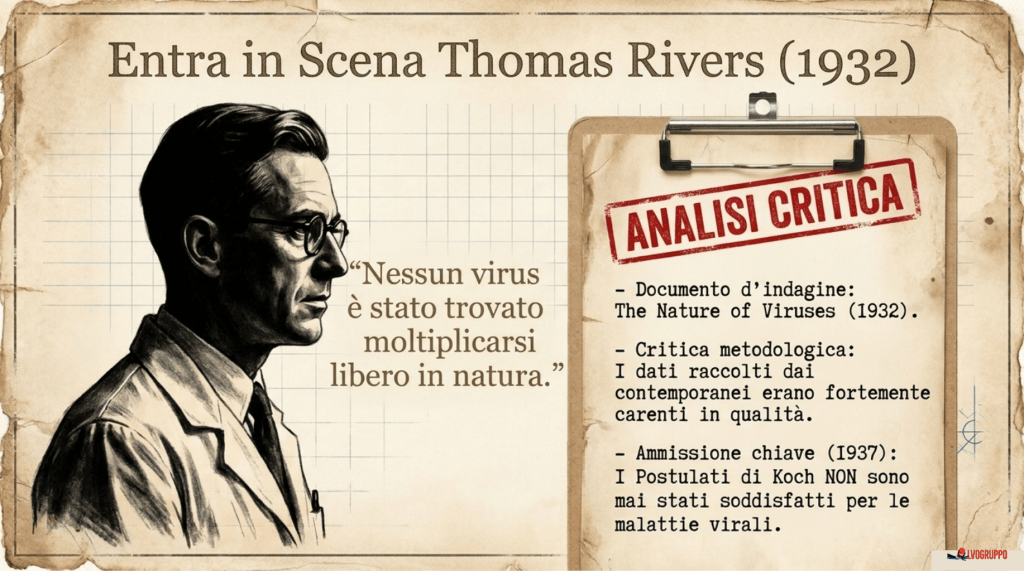
In un memoir orale attribuito a Thomas M. Rivers – figura di primo piano alla Rockefeller – ricorre una frase che oggi suona quasi provocatoria: “No viruses have been found multiplying free in nature.” La frase, databile tra anni Trenta e Quaranta, fotografa un punto di vista tipico dell’epoca: un virus come entità che non si moltiplica “libera” nell’ambiente, ma soltanto all’interno di cellule ospiti. Non è un giudizio definitivo sulla biologia dei virus; è lo spaccato di una disciplina in costruzione, alle prese con oggetti che più che essere tenuti in mano venivano inferiti attraverso preparazioni complesse, colture in tessuti e una batteria di metodi eterogenei.
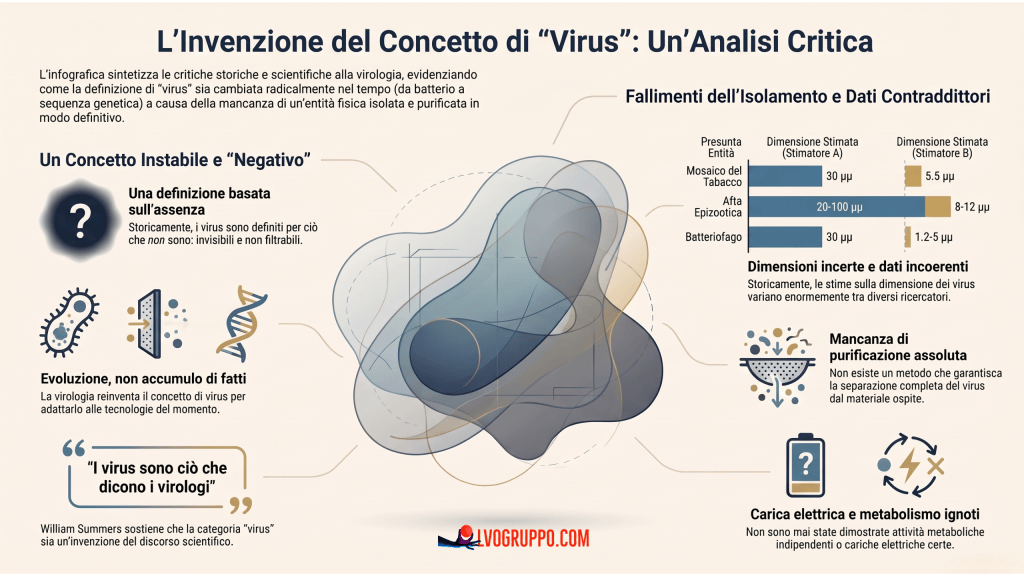
A distanza di decenni, storici della scienza come Ton van Helvoort e William C. Summers hanno messo in fila il filo problematico di questa storia. Van Helvoort sostiene che, nella prima metà del Novecento, il concetto di “virus filtrabile” fosse privo di chiarezza, e che i legami con la batteriologia fossero tanto stretti da rendere i virus non distinti “concettualmente” dai batteri. Summers, con una tesi che invita a cambiare prospettiva, parla di “invenzione” della categoria: i virus sono oggetti naturali, scrive, ma “in un senso reale, un virus è ciò che i virologi dicono che sia”, perché le nostre credenze e concezioni su di essi cambiano al cambiare di informazioni, strumenti, valori e standard scientifici. Non si tratta di relativismo facile: è il riconoscimento che linguaggi, tecniche e problemi al centro della scena scientifica determinano le nostre definizioni operative.
Questo articolo ripercorre quella storia concettuale e metodologica tenendo insieme tre piani: che cosa sostengono gli autori citati; il contesto in cui scrivono; e l’interpretazione che si può dare di volta in volta delle loro posizioni senza confonderle con fatti assodati e immutabili. Non è un processo alla virologia; è il tentativo di illuminare una trama di difficoltà sperimentali, definizioni “in negativo” e riformulazioni successive del concetto di “virus”, già ammesse con una singolare franchezza dai protagonisti stessi.
SCARICA LA PRESENTAZIONE COMPLETA
Un concetto instabile: dall’ibrido batteriologico alla categoria autonoma
Per comprendere la natura “inquieta” della categoria “virus” bisogna collocarsi nella scena sperimentale della prima metà del Novecento. La microbiologia nasceva e si consolidava attorno agli strumenti della batteriologia: colture su terreni di crescita, colorazioni, osservazione al microscopio ottico, applicazione dei postulati di Koch. Per gli agenti “filtrabili”, che sfuggivano a quell’arsenale perché troppo piccoli per essere visti, refrattari alla coltivazione su mezzi lifeless e indirettamente rilevabili, si misero in campo tecniche fisiche e chimiche: filtri a pori graduati, ultracentrifugazione, misure di diffusione, e poi, progressivamente, colture di tessuti e microscopia elettronica. In questo contesto, “virus” è una categoria per differenza rispetto al batterio: più piccolo, non visibile, non coltivabile su mezzi inerti. Una definizione “in negativo”, appunto.
È dentro questo panorama che Ton van Helvoort, in un saggio del 1996, sosterrà che il concetto di “virus filtrabile” mancava di chiarezza e certezza, e che negli anni Trenta e Quaranta i virus non erano ancora concettualmente distinti dai batteri: erano percepiti come “un’altra forma” del vivente microbico che la batteriologia studiava. William C. Summers, nel 2014, formulerà una domanda volutamente sottile: come hanno fatto generazioni di microbiologi ad arrivare all’idea che una parte delle entità con cui lavoravano richiedesse una categoria diversa? La sua risposta è che si è trattato di un’invenzione e reinvenzione continua: i virus sono “oggetti naturali”, ma le nostre concezioni cambiano in base a nuove informazioni, punti di vista e standard scientifici. È un invito a considerare la storia della virologia non come una marcia lineare di conquiste, ma come una “lotta continua per comprendere e organizzare osservazioni” che hanno reso obsolete, di volta in volta, certezze recenti.
Spiegare che il concetto di virus è stato instabile non significa negare l’esistenza di fenomeni cui oggi attribuiamo quell’etichetta. Significa, più semplicemente, far vedere la fatica concettuale e metodologica di una disciplina che ha lavorato a lungo con entità per lo più inferite per via indiretta, dentro “preparati” inevitabilmente impuri, con strumenti che restituivano segnali rumorosi e contraddittori. Proprio qui matureranno – a ondate – le riformulazioni decisive del concetto, fino alla sintesi genetica di André Lwoff e alle caute perplessità dello stesso Lwoff nel 1991.
Thomas Rivers (1932): tre definizioni negative e una lezione di prudenza
Nel 1932, Thomas M. Rivers pubblica The Nature of Viruses, un saggio che, a rileggerlo oggi, colpisce per onestà e misura. La constatazione da cui parte è semplice e spietata: i virus sono di solito caratterizzati da tre proprietà negative. Primo, invisibilità con i metodi microscopici ordinari. Secondo, capacità di attraversare filtri che trattengono batteri noti, dunque “filtrabilità”. Terzo, incapacità di propagarsi in assenza di cellule suscettibili. Rivers preferirebbe una definizione “positiva”, che non si limiti a dire che cosa i virus non sono. Prova a proporla insistendo sull’intima relazione parassitaria con l’ospite: i virus si moltiplicano solo in presenza di cellule suscettibili; spesso sono specie-specifici; possono indurre effetti citopatogeni che, da un lato, portano a tumori (come il sarcoma di Rous), dall’altro a lesioni vescicolari (come le “febbri labiali”); presentano corpi d’inclusione a livello intracellulare; molte malattie virali lasciano un’immunità duratura. È un quadro operativo che dà consistenza alla categoria. Ma, ammette Rivers, la “natura biologica” dei virus resta una “questione ancora aperta”.
Il cuore del suo saggio è una rassegna metodologica che, allora, suonava come un invito alla prudenza e, oggi, come un promemoria di rigore. Rivers passa in rassegna le stime di dimensioni, le misure di carica elettrica, i tentativi di purificazione, la coltivazione in mezzi lifeless o in tessuti, le prove di metabolismo autonomo, gli adattamenti in nuovi ospiti, le inclusioni, gli effetti di agenti fisici e chimici, le esperienze di “generazione spontanea” e le complicazioni date da contaminazioni e latenze, le risposte immunitarie e le agglutinazioni specifiche, i batteriofagi, i tumori filtrabili e la galassia di ipotesi sulla natura dei virus allora in circolazione. In ogni capitolo rientra la stessa questione: quanto possiamo dire “di che cosa sono fatti” i virus, se lavoriamo con preparati impuri, strumenti indiretti e indizi che, di volta in volta, si rivelano ambigui?
Due anni più tardi, in un testo del 1937, Rivers riconoscerà con altrettanta franchezza che “è ovvio che i postulati di Koch non sono stati soddisfatti nelle malattie virali”: un modo sobrio per dire che criteri pensati per batteri coltivabili e visibili mal si adattavano a questi nuovi oggetti. Il punto non era delegittimare l’impresa; era ricordare i limiti di criteri costruiti altrove e per altri scopi.
Dimensioni, carica elettrica, purificazione: come misurare ciò che non si vede
Se si volesse trovare una sintesi del problema metodologico che attanaglia la fase pionieristica della virologia, si potrebbe prenderlo da qui: si cercano proprietà di un’entità che non si può isolare in purezza, misurandone il segnale dentro un miscuglio. Il rischio è alto: finire per misurare la “firma” del preparato, non dell’agente di interesse. Rivers affronta di petto la questione a partire da tre capitoli esemplari: dimensioni, carica elettrica, purificazione.
Sulle dimensioni, la tecnica offriva tre strade: filtrazione e ultrafiltrazione (in cui si osserva il passaggio o la ritenzione attraverso filtri a pori graduati), diffusione (quanto velocemente “diffonde” un agente in un mezzo), centrifugazione (la velocità con cui particelle sedimentano in un campo centrifugo). Tutte tecniche indirette, tutte sensibili a dettagli di preparazione e calibrazione. Rivers elenca dati per almeno otto virus, e il ritratto che ne esce è insieme istruttivo e, per usare le sue parole, “divertente e sconfortante”. Le stime per lo stesso agente cambiano vistosamente tra gruppi e metodi. La stessa molecola di riferimento usata per calibrare molti di questi esperimenti – l’emoglobina – aveva una storia di revisioni: a lungo si era pensato avesse 30 uu di diametro; lavori successivi, come quelli di Svedberg e Nichols sulla centrifugazione e di Northrop e Anson sulla diffusione, hanno portato a rivedere il valore attorno a 5,5 uu. Se cambia la “riga” con cui si misura, cambiano tutti i “righelli” comparativi appesi ai suoi estremi.
Rivers, per esempio, ricorda che Duggar e Karrer, con l’ultrafiltrazione, avevano collocato il virus del mosaico del tabacco attorno a 30 uu, “dello stesso ordine di grandezza dell’emoglobina”; Vinson, alla luce del nuovo diametro per l’emoglobina, lo corresse a circa 5,5 uu. Zinsser e Tang stimavano l’herpetic virus tra 20 e 100 uu, Levaditi e Nicolau ritenevano che attraversasse membrane che trattenevano tossine, emosiline, complemento e globuline; Bedson, con centrifugazione, arrivò a sostenere che il virus erpetico “fosse probabilmente visibile”, dunque più grande. Olitsky e Boez collocavano il virus dell’afta epizootica tra 20 e 100 uu; Elford, con speciali membrane, lo stimava tra 8 e 12 uu. Per il poliomielitico, Krueger e Schultz (1929) con l’ultrafiltrazione posero un tetto a 300 uu; Clifton, Schultz e Gebhardt (1931) – sempre con ultrafiltrazione – spinsero la stima “sotto i 50 uu”. Sul virus della peste aviaria, Andriewsky ottenne 2,5 uu con ultrafiltrazione; Bechhold e Schlesinger, con centrifugazione, 120–130 uu. Il diametro del batteriofago era per d’Herelle ed Elford attorno a 30 uu; Krueger e Tamada, con preparazioni “purificate” e ultrafiltrazione, lo collocavano a 5 uu; Hetler e Bronfenbrenner, con un metodo di diffusione, tra 1,2 e 22,8 uu. Il Rous virus variava tra 20 e 100 uu per Zinsser e Tang, 50 uu per Mendelsohn, Clifton e Lewis, 10 uu per Frankel. Sui virus vaccinali, Levaditi e Nicolau sostenevano il passaggio attraverso membrane che bloccavano tossine, emosiline, complemento e globuline; Bland, con centrifugazione, non solo contestava quei risultati, ma concludeva che il “vaccine virus” fosse “probabilmente abbastanza grande da essere visto”; Bechhold e Schlesinger, sempre con centrifugazione, stimavano 210–230 uu di diametro; Yaoi e Kasai, lavorando con virus “purificato”, osservavano che diffondeva alla stessa velocità delle particelle di fucsina, e dunque non sarebbe stato visibile.
SCARICA LA PRESENTAZIONE COMPLETA
La conclusione di Rivers, dopo questa rassegna di numeri discordanti, è asciutta: con i metodi indiretti si può dire che i virus sono piccoli, qualcuno “estremamente minuto”; ma “nessuna delle cifre può essere accettata senza riserva” e “al momento la dimensione esatta di alcun virus è nota”. Il motivo della divergenza sta in un mix di cause – sperimentazione inadeguata, pensiero affrettato, pregiudizi, metodi imperfetti, e la natura ardua dei problemi – e in un fantasma metodologico sempre presente: la possibilità di star misurando “particelle di cellule degradate a cui i virus sono adsorbiti”, non i virus stessi.
Sulla carica elettrica, lo scenario non è meno complicato. In linea di massima, batteri e proteine, in condizioni biologiche “ordinarie” di pH, portano carica negativa, e non pochi ricercatori tentarono di caratterizzare i virus osservandone il comportamento in un campo elettrico. Qui spuntano dettagli di pH che variano da agente ad agente, e da laboratorio a laboratorio. Kligler e collaboratori – usando un cosiddetto batteriofago “protein-free” – trovarono l’agente anfotero in soluzioni acide e decisamente alcaline, e prevalentemente negativo in soluzioni neutre o debolmente alcaline; Krueger e colleghi riportarono il fago negativo tra pH 9,0 e 3,4, e positivo a pH 3,35; Todd lo vide negativo tra pH 3,36 e 7,6; Natarajan e Hyde, per i fagi di bacillo tifoide e di dissenteria di Flexner, riscontrarono elettronegatività rispettivamente tra pH 4,9–9,3 e 5,4–9,3; un colifago a placca piccola risultò elettronegativo sotto pH 8,3 ma, a pH più alti, “si muoveva verso entrambi i poli”; quello a placca grande era elettronegativo tra pH 5,4–6,1, e ad alcalinità maggiori, vagava anch’esso tra i poli. Il virus della rabbia “fisso” appariva negativo tra pH 6,0–9,3; il vaccino – per Douglas e Smith – portava carica negativa tra pH 5,5–8,4, mentre Yaoi e Kasai notarono che tra pH 6–7 più virus si raccoglieva all’anodo e tra pH 8–9 si dimostrava solo all’anodo. Il fowl-pox in preparazioni “protein-free” era positivo sul lato acido, anfotero in soluzioni neutre e negativo in alcalino; Natarajan e Hyde lo considerarono anfotero tra pH 6,4–9,3. Sul virus dell’afta epizootica Olitsky e Boez lo credevano positivo; Sichert-Modrow lo riteneva negativo tra pH 7,0–8,1. Il poliomielitico migrava all’anodo; il Rous virus, per Pulcher, veniva adsorbito da emoglobine elettropositive e non da quelle elettronegative – dunque l’agente, per lui, era negativo. Il virus della mixomatosi del coniglio risultava elettronegativo tra pH 4,9–9,3; l’herpetic virus tra pH 7,0–8,9.
Sembra emergere una tendenza alla negatività della carica in condizioni fisiologiche, in analogia con batteri, cellule e numerose proteine. Ma Rivers mette in guardia: i preparati contenenti virus “di solito consistono principalmente di proteine e frammenti di cellule degradate”, per cui la carica misurata potrebbe appartenere non alle particelle virali ma ai loro “carrier”. Anche dove si parla di preparazioni “protein-free”, le procedure di purificazione non convincono fino in fondo che ci sia una separazione completa. La sua conclusione è prudente e netta: “al momento è impossibile affermare in modo definitivo quale carica trasportino i virus”.
È qui che entra in scena la parola chiave: purificazione. Rivers lo dice senza giri di parole: poiché le emulsioni “contenenti virus” sono formate in gran parte da sostanze non correlate all’agente attivo, è naturale che si tenti di ottenere i virus in stato puro o relativamente puro. Preparati più puliti sono essenziali per stimare dimensioni e carica, per studiare le risposte immunologiche, per avvicinarsi a una risposta sulla natura dell’agente.
Cita un lavoro di Murphy, impegnato a purificare l’agente del sarcoma di Rous attraverso precipitazioni ripetute, adsorbimenti e eluizioni: agli occhi di Murphy, “è difficilmente concepibile che la frazione attiva così ottenuta, una sostanza purificata da ripetute precipitazioni, possa portare con sé attraverso tutte queste manipolazioni un organismo o un virus vivente”; per lui, si trattava di un enzima.
Altri lavoratori non concordavano, ricordando che agenti di malattie come la mixomatosi del coniglio, l’afta epizootica, la batteriofagia, il fowl-pox, la rabbia, la poliomielite e il mosaico vegetale erano stati sottoposti a manipolazioni simili “restando attivi” in vari stati di purezza. Ma la conclusione metodologica di Rivers è la stessa che aveva formulato nel 1927: “è improbabile che un virus sia stato ottenuto in stato di assoluta purezza”. E aggiunge che i risultati già acquisiti sono incoraggianti, ma che il traguardo resta avanti: solo così, forse, si potrà arrivare a un concetto più accurato della “natura” di alcuni virus, fino – ipotizza – a mostrare che “il numero di atomi di azoto per ogni unità infettiva” in alcuni preparati è insufficiente a giustificare che si tratti di “strutture viventi organizzate”.
Coltivare o non coltivare: tra mezzi lifeless e colture di tessuti
Per chi guardava alla “vita” di questi agenti, la coltivazione era una prova di forza sperimentale e concettuale. Nei decenni precedenti al 1932, non erano mancate segnalazioni che parlavano di “colture riuscite” su mezzi privi di cellule; ma quando quei risultati furono affrontati da laboratori indipendenti, non trovarono conferme. Rivers ricorda Frosch e Dahmen, che dichiararono di aver coltivato il virus dell’afta epizootica su “mezzi ordinari”; le commissioni tedesca, inglese e americana non confermarono. Olitsky riportò la crescita del virus del mosaico in un mezzo senza cellule; ripetendo il lavoro, concluse di non aver ottenuto una moltiplicazione vera. Più di recente (per lui), Eagles e McClean avevano scritto che il virus vaccinale “si rigenera” in un mezzo privo di cellule: una lettura attenta dei loro articoli lasciava però dubbi sul fatto che alcuni dei loro media fossero davvero cell-free, e sull’effettiva moltiplicazione in substrati sicuramente privi di cellule. Lo stesso Rivers, con Haagen, Muckenfuss e Li, aveva tentato a lungo – senza successo – di coltivare il virus vaccinale in mezzi cell-free molto simili a quelli usati da Eagles e McClean. Invece, la coltivazione “in presenza di cellule viventi in vitro” aveva dato più soddisfazioni, tanto nei loro laboratori quanto in quello di Maitland.
È interessante che in questi esperimenti si vedesse già, con una certa chiarezza, la doppia specificità che nei decenni successivi si sarebbe rivelata un tratto importante: quella di specie e quella di tipo cellulare. Il virus del fowl-pox, per esempio, innocuo per topi e ratti, “non rigenera” in colture dei loro tessuti; l’afta epizootica, che non attacca i polli, non cresce in colture di embrione di pollo e plasma. E oltre alla specificità di specie, alcune colture lasciavano vedere preferenze cellulari: il virus della peste aviaria si moltiplicava in presenza di cute e cervello di embrione di pollo, ma non in colture di soli fibroblasti; il virus dell’afta epizootica aumentava quando il mezzo conteneva tessuto di embrione di cavia, ma non cresceva in presenza dei soli fibroblasti o di frammenti di miocardio.
Rivers lo dice con franchezza: se c’è un “esperimento cruciale”, questo sarebbe la coltivazione indiscussa su mezzi lifeless. Ma aggiunge che potrebbe essere “impossibile” per alcuni agenti, se si tratta di parassiti obbligati, proprio come accade per il plasmodio della malaria. E chiosa con un’analogia che, allora, suonava rassicurante: “per studiare i fenomeni dell’elettricità e controllarne l’attività” non è “imperativo” “vedere e sapere che cos’è” l’elettricità. Allo stesso modo, si può avanzare nella comprensione e nel controllo delle malattie anche senza una coltura su mezzi inerti; ma ci si deve rassegnare al fatto che questa condizione “impedirà, per il momento, una definizione completa” della natura di questi agenti.
Metabolismo, adattamento e il crinale “vivente/non vivente”
Pochi temi hanno acceso il dibattito quanto la dicotomia “animate/inanimate”. Rivers passa in rassegna gli sforzi – tecnicamente difficili – per dimostrare un metabolismo indipendente dei virus. Alcune indagini, tra 95 e 99 nella sua rassegna, avevano dato risultati negativi. Ma invitava a non trarre una conclusione troppo rapida: l’assenza di evidenze – specialmente con metodi d’allora – non bastava a sostenere l’assenza del fenomeno. Le tecniche potrebbero non essere state “abbastanza delicate” per intercettarlo.
Sull’adattamento, poi, il terreno era scivoloso perché consentiva interpretazioni opposte a partire dagli stessi fatti. Il virus del vaiolo, fatto passare attraverso scimmie verso conigli e vitelli, e poi riportato nell’uomo, non era più “virus del vaiolo” ma “vaccino”: la malattia, vaccinia, non è contagiosa come il vaiolo. L’agente della febbre gialla, dopo numerosi passaggi intracerebrali nel topo, perdeva molta della sua patogenicità per le scimmie se inoculato per via endovenosa o intraperitoneale, ma guadagnava la capacità di produrre un’encefalite trasmissibile se iniettato nel cervello. Per alcuni, questi erano classici fenomeni di adattamento, segni tipici della vita. Per altri, il cambiamento non era “nell’agente” ma “nell’ospite”: cellule diverse (di topo, coniglio, scimmia, uomo), per via di differenze intrinseche, “non producono sempre sostanze identiche” quando esposte a stimoli simili. I sostenitori dell’ipotesi “endogena” affermavano che il cambiamento stava nell’apparato reattivo dell’organismo; quelli dell’ipotesi “organismica” lo riconducevano all’agente.
Già nel 1949, il pioniere dei virus vegetali N. W. Pirie si era detto “agnostico” sulla natura dei virus – molecole o microbi? – e aveva richiamato l’attenzione su una cosa imbarazzante per l’ipotesi molecolare rigida: la variabilità della composizione chimica riportata per uno stesso virus mal si conciliava con l’idea di una singola molecola ben definita. È un esempio di come, ancora a metà del secolo, il consenso sulla “natura” di questi agenti fosse lontano dall’essere granitico.
In inclusioni e tumori: indizi diagnostici, non definizioni ontologiche
Un’altra via indiretta per “vedere” i virus erano le inclusioni: strutture osservabili nel nucleo o nel citoplasma di cellule danneggiate. Rivers presenta una galleria di interpretazioni diverse: Lipschitz sostiene che, in molte malattie, consistano in ammassi compatti di particelle virali, ma considera le inclusioni del morbillo “nient’altro che corpi centrali alterati”; Goodpasture pensa che i corpi di Negri nella rabbia siano costituiti da mitocondri e neurofibrille degenerati; Levaditi e Manouelian li considerano protozoi (con etichette come Glugea lyssae o Encephalitoxoon rabiei).
Goodpasture e collaboratori mostrano che l’agente del fowl-pox è “intimamente associato” ai corpi di Bollinger – vescicole lipidiche con piccoli corpi coccoidi immersi in una matrice proteica. Glaser, al contrario, ha evidenze che i “corpi poliedrici”, inclusioni caratteristiche nelle “malattie del deperimento” delle larve di lepidotteri, siano proteine cristalline non infettive.
La conclusione di Rivers è un invito alla prudenza: le inclusioni “possono nascere in molti modi”, “possono o non possono contenere virus”, e “generalizzazioni” sulla loro natura “sono azzardate”. Le “piccole forme coccoidi” che Borrel vede nel fowl-pox e Paschen nella vaccinia appaiono “estremamente minute” e, morfologicamente, “quasi organismi”. Perché non prenderle come prova della natura “organismica” di certi virus? Per almeno due motivi, risponde Rivers. Primo, dai soli dati morfologici e di colorazione non si può decidere se “esista vita autonoma” in oggetti così piccoli. Secondo, lo stesso Goodpasture che riteneva i corpi coccoidi del fowl-pox rappresentativi del virus, affermava che strutture simili viste in cervelli rabici (e considerate etiologicamente importanti, per esempio, da Babes e Koch) fossero “probabilmente mitocondri degenerati”. Borrel, d’altro canto, aveva descritto corpi simili in altre malattie “virali” la cui agentività, per ultrafiltrazione, appariva al di sotto della risoluzione microscopica. E Craciun e Oppenheimer – pur avendo coltivato i piccoli corpi della vaccinia – ammettono di “non avere prova morfologica di un aumento del numero di granuli”, dato che non si distinguono facilmente da altri granuli “normalmente visibili” in colture tissutali.
Infine, ricordava Rivers, i mitocondri, sotto certi aspetti, somigliano ai batteri: aumentano o diminuiscono di numero nelle cellule, cambiano dimensioni e forma con stimoli appropriati, talvolta “si dividono”. Ma non per questo sono considerati “agenti viventi autonomi”. Anche quando si accetta che virus siano “presenti in certe inclusioni”, “resta il dubbio” sulla natura organismica delle piccole forme coccoidi osservate.
In uno scarto interessante, Rivers richiama l’attenzione su iperplasie e necrosi – tratti patologici indotti da virus tanto importanti quanto le inclusioni. In alcune malattie “virali”, per esempio fowl-pox e verruche, l’eccessiva stimolazione delle cellule invita a pensare per analogia alle neoplasie maligne. “Indubbiamente”, scrive, “un certo numero di tumori nel pollo è causato da agenti separabili dalle cellule”, e pur non essendoci prova che tumori dei mammiferi sorgano così, “la possibilità” merita di essere considerata. Ma il fatto che “alcuni tumori” siano prodotti da agenti filtrabili “non è prova” che “tutti” i tumori siano così. Anche qui: indizi, non definizioni ontologiche.
Batteri “filtrabili”, fagi e l’ambiguità endogeno/esogeno
Una linea di ricerca di cui Rivers prende atto è quella che vede in alcuni “virus” forme filtrabili di batteri. È una tentazione vecchia e, al tempo stesso, figlia del contesto sperimentale: se la differenza tra batteri e virus è “di grado” e tutta giocata su filtri, non sorprende che qualcuno voglia intrecciarle. Rivers elenca posizioni in campo: l’idea che il batteriofago sia “una fase del ciclo di vita di batteri lisogeni”; che il virus della febbre gialla e quello del colera suino siano “forme invisibili” rispettivamente di Leptospira icteroides e B. suipestifer; che l’agente di scarlattina sia una “forma filtrabile” di streptococco emolitico; che agenti di poliomielite, encefalite epidemica, encefalite della volpe, raffreddori, morbillo e influenza rappresentino “stadi del ciclo vitale” di streptococchi verdi. La sua chiosa è rapida: “poiché l’esistenza dei cicli di vita batterici è dubbia”, usare le loro presunte forme filtrabili per risolvere “un altro problema irrisolto” – la natura dei virus – è “ingiustificato”. E con un inciso quasi ironico cita Kendall: “l’albume d’uovo, filtrato attraverso filtri Berkefeld W (dopo diluizione in soluzione fisiologica sterile), raramente è sterile”. Una bomba a mano per i virologi dell’epoca: molti virus noti “non passano” attraverso filtri W; il fatto che l’albume “filtrato” contenga ancora agenti viventi indica che filtri e procedimenti non sono la garanzia che si credeva.
Il caso dei fagi mette su strada un’altra questione che tornerà con forza più avanti: la distinzione tra “endogeno” ed “esogeno”. Nel 1953, André Lwoff – che diventerà uno degli architetti della definizione genetica del 1957 – si chiederà apertamente che cosa sia un virus e se un batteriofago lo sia. Osserverà che i virus sono “per definizione esogeni”; ma il fago temperato sembra “sempre formarsi all’interno dell’ospite” e, in questo senso, potrebbe essere descritto come “endogeno”. “Se il profago è filogeneticamente endogeno, allora il fago temperato prodotto da un batterio lisogeno deve essere descritto come endogeno.” È un giro di vite concettuale che fa saltare il confine tradizionale. E prepara il terreno alla riformulazione del 1957, quando Lwoff fonderà la definizione sulla natura “genetica” di questi agenti, mantenendo però – come ricorderà Milton W. Taylor nel 2014 – un’impostazione ancora largamente “negativa” (assenza di metabolismo, ribosomi, tRNA, ecc.). Nel 1991, da grande vecchio della disciplina, Lwoff avvertirà che la virologia rischia di “perdere l’anima”, perché “i virus tendono a diventare sequenze”: un monito a non ridurre la categoria alla sola informazione, perdendo di vista l’intreccio tra codice, contesto e fenomeni visibili in laboratorio.
Agenti fisici e chimici, generazione “spontanea”, contaminazione e latenza
Un’altra serie di strategie usate per “definire” la natura dei virus passava per il loro comportamento in presenza di agenti fisici e chimici. L’idea era semplice: se determinate sostanze o condizioni distinguono tra batteri e protozoi, o tra vivente e non vivente, si potrà usarle come “test decisivi” anche qui. Rivers scorre le pagine con occhio scettico. Bile e saponina danneggiano i protozoi e, di solito, non i batteri: alcuni virus – per esempio il rabico – sono “inattivati”, e questo ha spinto certi lavoratori a considerarli protozoi. Ma le eccezioni sono numerose e invalidano il test come discriminante “vita/non vita” o “batteri/protozoi”. L’agente del sarcoma di Rous è più resistente dei batteri alla luce ultravioletta, e Murphy usa questo dato a sostegno della sua ipotesi “enzimatica”; d’altro canto, il batteriofago – la cui “vita” molti allora mettevano in dubbio – è “sensibile” alla luce UV “quanto i batteri”. Sanderson, a −78 °C, non vide diminuzioni di titolo in due ceppi di batteriofago sottoposti a 20 congelamenti e scongelamenti successivi, e concluse che il fago dovesse essere “qualcosa di diverso da un organismo vivente”, dato che batteri e cellule “muoiono” dopo ripetuti cicli gelo-disgelo. Rivers, però, mostra che colonie di bacillo del colon, Virus III, virus vaccinale, virus erpetico, batteriofago, complemento e tripsina sono tutti “uccisi o inattivati” da congelamento a −185 °C ripetuto e scongelamento, con resistenze diverse tra agenti. L’esito, per lui, è chiaro: la distruzione o inattivazione per gelo-disgelo non prova nulla “sulla presenza di vita”. Lo stesso vale per calore, desiccazione, ossidazione, coloranti: i risultati non forniscono “evidenze convincenti” sulla natura dei virus. Sembra una sconfitta, ma è piuttosto il segno che test singoli, presi isolatamente, non bastano a definire ontologie.
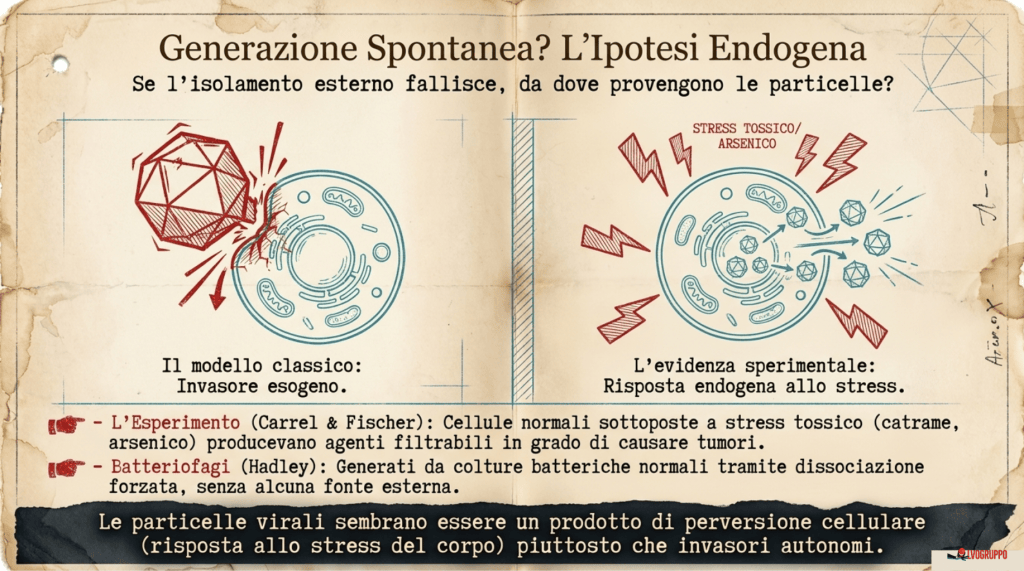
Argomento più scivoloso, e concettualmente fecondo, è quello che Rivers intitola “generazione spontanea di virus”: più precisamente, l’ipotesi che “l’origine” dei virus sia nella cellula ospite, e che “stimoli appropriati” inducano cellule normali a “fabbricare” agenti infettivi. Qui passano esperimenti che, se confermati e puliti dalle molte possibili contaminazioni, avrebbero un peso enorme. Carrel – mescolando embrioni di pollo tritati con catrame, indolo o arsenico e iniettandoli in polli normali – riferisce che, in una piccola percentuale di casi, si formavano tumori simili al sarcoma di Rous n. 1, “trasmissibili con filtrati privi di cellule”. Fischer, trattando colture di cellule normali con arsenico, riportava di aver ottenuto, “in un’occasione”, un agente filtrabile capace di causare tumori. Murphy, con una metodologia di cui non descriveva i dettagli, dichiarò di aver estratto un “agente tumorale filtrabile” dalle gonadi di galli Plymouth Rock dall’aspetto normale. Hadley e i suoi collaboratori scrivevano, con riferimento ai batteri, che era possibile “ottenere batteriofago da colture batteriche normali per mezzo di dissociazione forzata”: niente fagi “esterni”, solo manipolazioni endogene.
SCARICA LA PRESENTAZIONE COMPLETA
Rivers dà a queste osservazioni lo spazio che meritano, e insieme pone condizioni severe: “se confermate e interpretate correttamente”, sarebbero di “fondamentale importanza biologica”. Ma, osserva, “tutti gli esperimenti” in questione sono stati condotti in laboratori dove si maneggiavano regolarmente agenti “simili” a quelli che si dice di “aver portato all’esistenza”. In simili ambienti, escludere contaminazioni di animali, tessuti, batteri, emulsioni e filtrati “è sempre difficile”. Inoltre, non si può escludere “la preesistenza di virus latenti” o di trace amounts in embrioni, gonadi, polli e colture batteriche “supposte normali”. Ricorda che Flexner ha dimostrato la presenza del “virus” della poliomielite in lavaggi nasali di contatti “normali”; che Andrewes e Miller, lavorando sul Virus III nei conigli, hanno avuto esperienze interessanti con “portatori sani”; che Cole e Kuttner hanno prodotto risultati analoghi con il “virus della ghiandola salivare” nei porcellini d’India; che “portatori di virus” sono un fenomeno generale in animali, piante e batteri. In breve: prima di dedurre “generazioni” ex novo, bisogna assicurarsi che non ci siano contaminazioni o latenze.
È un tema destinato a tornare. Con i fagi, l’idea verrà riformulata in chiave genetica: elementi integrati (profagi) che possono “riattivarsi” in fase litica. La distinzione “endogeno/esogeno” smetterà di essere una linea ontologica netta per farsi un fatto biologico: lo stesso oggetto può trovarsi “dentro” o “fuori” a seconda dello stato.
Immunità, anticorpi e agglutinazioni: indizi sì, sentenze no
Le malattie “virali” hanno un profilo immunologico caratteristico: spesso lasciano un’immunità duratura; nei sieri compaiono anticorpi neutralizzanti. Che cosa significano questi fatti per la “natura” dei virus? Rivers mette per iscritto alcuni punti che, letti con attenzione, dicono molto. Se le nostre idee sulla natura degli antigeni sono corrette – e colloca un “se” che allora era ancora cauto – allora i virus sono proteine, o “strettamente legati a proteine”. Inoltre, non solo sono “fortemente antigenici”, ma “danno luogo ad anticorpi diversi da quelli eccitati dalle proteine delle cellule ospiti”. Il fenomeno vale anche per i batteriofagi. Questi fatti sono stati usati a sostegno dell’origine “esogena” dei virus: se si producono anticorpi “diversi” da quelli contro le proteine dell’ospite, l’agente dev’essere “altro”.
Ma la generalizzazione, ricorda Rivers, inciampa in fenomeni biologici noti: la proteina del cristallino, per esempio, è specifica d’organo più che di specie; la “uveite simpatica” nell’occhio non lesionato non è causata da microrganismi, ma da “reazioni del corpo” a sostanze derivate da cellule lesionate dell’altro occhio. Se “un agente lifeless” può essere “dannoso” per la cellula che lo produce e “indurre risposte immunologiche” indipendenti da quelle “eccitate dalla cellula”, l’argomento immunologico, da solo, non decide sulla natura “esogena”.
Inoltre, il “modo d’azione” degli anticorpi neutralizzanti “non è chiarito”. Sono stati descritti anticorpi fissanti il complemento e anticorpi che causano “flocculazione” in emulsioni “virali”; Schultz e collaboratori contestano che queste classi di anticorpi siano “eccitate da virus” e sostengono che i fenomeni immunologici nelle malattie “virali” siano “paragonabili a quelli indotti da tossine”. Ciononostante, varie evidenze spingono a ritenere “più che probabile” che alcune malattie da virus portino alla produzione di questi anticorpi. Ledingham, poi, ha dimostrato che i corpi di Borrel nel fowl-pox e quelli di Paschen nella vaccinia “sono specificamente agglutinati” da antisieri “anti-fowl-pox” e “anti-vaccinia”: esperimenti che, letti così, “indicano” che i “corpi elementari” sono “organismi viventi” e “rappresentano il virus”.
Rivers, però, mantiene uno sguardo scettico e fa un passo avanti: non c’è motivo di dubitare che le agglutinazioni specifiche si siano verificate; si può dire che sono un’evidenza “presuntiva” della natura organismica dei corpi; ma non si può affermare “categoricamente” che “i corpi elementari rappresentano il virus da soli”, poiché Jones ha dimostrato che “particelle di collodio” trattate con vari tipi di proteine, e poi lavate con cura, “sono specificamente agglutinate” dagli antisieri appropriati. Insomma, i corpi di Borrel e Paschen, pur non essendo organismi, ma “avendo virus adsorbiti su di loro”, potrebbero “essere agglutinati specificamente” da antisieri “anti-virus”.
Gye, con il Rous virus, racconta che, iniettandolo ripetutamente in ospiti “estranei”, si generano “due gruppi di anticorpi”: uno “agisce sul virus stesso”, l’altro sul “fattore specifico” derivato dalla cellula ospite; “entrambi” inattivano il virus. Rivers prende atto di queste letture come di altre: l’inibitore di Rous segnalato da Murphy e Sittenfield, che – per Murphy – non sarebbe un “anticorpo ordinario”, e che lo porta a concludere che “l’immunità” contro l’agente di Rous “è diversa” da quella delle altre malattie “virali”. Ricorda però che sostanze “inibenti” esaustivamente descritte sono state ottenute da tessuti infettati da virus (per esempio, “dal cervello di animali rabbiosi”), e che altri lavori (Andrewes) “indicano” che le risposte immuni ai “filtrabili” che causano tumori nel pollo “non sono uniche”, ma hanno molto in comune con quelle incontrate in altre malattie “virali”. Il riassunto è semplice: le osservazioni immunologiche giocano un ruolo importante nella discussione sulla natura dei virus; ma, per ora, “questo approccio non ci ha portato a una soluzione definitiva del problema”.
I molti volti del “virus”: organismi, enzimi, molecole, parassiti
Verso la fine della sua rassegna, Rivers offre una mappa delle posizioni in campo sul “che cosa sono i virus” che merita di essere trascritta in prosa, per mostrare quanto vario e disunito fosse il quadro interpretativo.
Sul virus del mosaico delle piante, Beijerinck lo considerava un “fluido contagioso vivente”; Woods un “enzima ossidante”; Goldstein un “protozoo parassita”; Vinson una “sostanza chimica inanimata”. “La maggior parte” dei lavoratori era però dell’idea che si trattasse di un “organismo vivente minuto”.
Sull’agente della rabbia, le etichette oscillavano con disinvoltura tra le scuole. Higyes pensava a un “enzima”, o – in alternativa – che i tessuti “potessero diventare spontaneamente virulenti” a seguito di modifiche della loro composizione chimica. Remlinger, a un certo punto, scrisse che “il virus della rabbia, che è a un tempo filtrabile, diffusibile e capace di riprodurre la malattia di caso in caso, pare collocarsi a metà strada tra i microbi e le diastasi”. Più tardi, pubblicherà un articolo sull’“evoluzione del parassita della rabbia”. Levaditi e altri portarono evidenze “a favore” dell’idea che l’agente causale sia un protozoo. La maggioranza degli investigatori teneva il concetto che l’incitante fosse un “organismo vivente la cui natura non è definitivamente nota”.
Sul batteriofago c’era una vera frattura: “numerosi lavoratori” lo ritenevano un “agente inanimato”, altri “un organismo vivente”. E le idee su che cosa fosse quell’“agente inanimato” o quell’“organismo vivente” variavano a loro volta. Chi voleva entrare nel dettaglio delle varie “scuole” trovava riferimenti a Twort, d’Herelle, Bordet, Bronfenbrenner, Burnet e lo stesso Hadley.
Sul fowl-pox, alcuni lo “descrivevano” come “protozoo parassita”; Sanfelice suggeriva che fosse “un veleno nucleoproteico fabbricato dalle cellule infette”; Borrel, Goodpasture e Ledingham sostenevano che fosse un “organismo coccoide minuto” capace di “rigenerarsi” nelle cellule parassitate.
Sull’agente del Sarcoma di Rous, c’era chi lo voleva “animato”, chi – come Gye – lo pensava “a due fattori”, “uno un organismo vivente esogeno, l’altro un fattore specifico inanimato” derivato da cellule infette. Murphy parlava di “sostanza di tipo enzimatico”, e più tardi lo avrebbe paragonato a “sostanze filtrabili capaci di convertire il melitensis in paramelitensis, o di trasformare una forma specifica di pneumococco in un’altra”: “agenti, prodotti da cellule specializzate, capaci di conferire una peculiare qualità tipologica a cellule indifferenziate della stessa specie, che a loro volta producono il fattore attivo e lo trasmettono ai discendenti”. Per questo tipo di “agente”, Murphy proponeva il nome “mutageni trasmissibili”.
Quel che Rivers chiede al lettore è di considerare queste mappe senza forzarle in una gerarchia affrettata. Si può raggruppare: vi sono concetti in cui “un certo stimolo produce cambiamenti nelle cellule” che vengono ereditati dalle figlie; non si rilevano agenti “separabili dalle cellule”, e i fenomeni immunologici differiscono da quelli delle “malattie virali”. È l’ipotesi in cui si collocherebbero alcuni meccanismi tumorali (per esempio, nei mammiferi). Altri concetti vedono lo stimolo appropriato indurre le cellule normali a “fare una sostanza x” che “si lega strettamente a parti y delle cellule”: un complesso xy, separabile dalle cellule ma capace di “incitare la sua stessa produzione”, che può passare direttamente alle cellule figlie o, una volta extracellulare, entrare in nuove cellule normali; il complesso xy è “antigenico”, e cellule liberate da esso “presumibilmente tornano normali”. Una variante simile immagina una “sostanza x” “non strettamente legata” a parti della cellula; anch’essa “separabile”, “capace di spingere” alla sua formazione e “antigenica”; entra ed esce, e cellule liberate “tornano normali”. Infine, vi è il concetto “più generalmente accettato”: x non è un prodotto “della perversione cellulare”, ma un “organismo vivente minuto”. Entra nelle cellule, si moltiplica, produce malattia, è separabile dalle cellule e antigenico; anche qui, le cellule liberate “presumibilmente tornano normali”. Talvolta x è “assorbito” da particelle y della cellula ospite, e si ottengono evidenze di un complesso xy.
Rivers fa notare che, “per scopi pratici”, cambia poco quale dei tre ultimi concetti venga abbracciato; “teoricamente”, invece, cambia molto: nella seconda e terza ipotesi, x è un “agente inanimato” prodotto da “attività cellulare pervertita”; nella quarta, è un “organismo autonomo”. A quel punto, però, arriva la sua firma: “nessuna evidenza inequivocabile della validità di alcuno di questi concetti è stata addotta”.
Koch, definizioni negative e il paradosso operativo
Nel 1937, Rivers prende di petto anche la vexata quaestio dei postulati di Koch. Il succo della sua osservazione è noto: criteri nati per microrganismi visibili, isolabili e coltivabili in purezza su mezzi inerti non si applicano bene a entità che si moltiplicano soltanto all’interno delle cellule. La stessa stagione porterà André Lwoff – nel 1957, e ancora nel 1971 – a consolidare una definizione dei virus per assenza: “incapacità di crescere e dividersi”, “assenza di metabolismo”, “assenza dell’informazione per gli enzimi del metabolismo energetico”, “assenza di tRNA”, “assenza di ribosomi” e “della corrispondente informazione”. Milton W. Taylor, in un saggio del 2014, lo dirà con chiarezza: anche nel dopoguerra, la definizione rimane “negativa”, centrata su ciò che “non c’è”.
È un paradosso interessante. Proprio le definizioni in negativo – invisibilità, filtrabilità, non coltivabilità su mezzi inerti; e poi “assenza di metabolismo”, di ribosomi, di tRNA – hanno reso possibili procedure sperimentali, strumenti diagnostici, revisioni delle tecniche di coltura in vitro, saggi immunologici, strategie di neutralizzazione, che hanno fatto “avanzare la disciplina”. Ma, concettualmente, hanno lasciato aperta la domanda fondamentale: che cosa intendiamo quando diciamo “virus”? È qui che si incastrano la prudenza di Rivers, la sintesi genetica di Lwoff e la lettura storiografica di Summers: le definizioni funzionano perché sono operative; durano finché servono; poi chiedono di essere aggiornate, o almeno di essere lette alla luce degli strumenti che le hanno rese possibili.
André Lwoff: tra esitazioni (1953), definizione genetica (1957) e monito (1991)
La traiettoria di André Lwoff è, forse, il caso più esplicito di come la categoria “virus” si sia plasmata con le domande e gli strumenti del suo tempo, e di come lo stesso protagonista colga, decenni dopo, il rischio di ridurre in eccesso la grana del concetto.
Nel 1953, Lwoff si domanda apertamente “che cosa” sia un virus e se i batteriofagi lo siano. Osserva che i virus, per definizione, sono “esogeni”, mentre i fagi temperati “appaiono formarsi sempre all’interno dell’ospite” e potrebbero perciò essere detti “endogeni”. “Se il profago è filogeneticamente endogeno, il fago temperato prodotto da un batterio lisogeno deve essere descritto come endogeno.” È un colpo d’ascia su un nodo semantico-concettuale, non un cavillo: segnala che le parole devono inseguire i fenomeni, non viceversa. Con i fagi si chiarirà progressivamente l’esistenza di elementi genetici integrati (profagi), capaci di passare a fase litica: la distinzione endogeno/esogeno diventa meno una dicotomia metafisica e più una dinamica biologica di stato e contesto.
Quattro anni più tardi, nel 1957, Lwoff propone la sua definizione “moderna”: i virus sono “entità genetiche obbligatoriamente intracellulari”, prive di metabolismo proprio, incapaci di crescere e dividere autonomamente, senza ribosomi e tRNA. È, di nuovo, una definizione per assenza, ma in sintonia con il linguaggio della biologia molecolare nascente e con l’uso dei fagi come strumenti per sondare il “codice della vita”. In quel decennio, la virologia cessa di essere “solo” una disciplina della trasmissibilità e diventa terreno per afferrare l’informazione genetica, i meccanismi di replicazione, la sintesi proteica.
Nel 1971, Lwoff insisterà sugli stessi tratti; e nel 1991, con uno sguardo che anticipa la stagione ipergenomica, lancerà un avvertimento: la virologia rischia di “perdere l’anima”, perché i virus “tendono a diventare sequenze”. Un richiamo che, oggi, dice molto: la potenza delle tecniche di sequenziamento ha rischiato, in alcuni contesti, di “appiattire” la categoria sulla sola informazione codificata, perdendo l’intreccio con contesti cellulari e fenomeni biologici. È un rischio reale: leggere i virus come “sequenze” può essere utilissimo per tracciare, classificare, capire parentele, ma non basta a rendere l’interezza di ciò che accade a livello di interazione con l’ospite, di espressione, di processi che emergono solo in situazioni esperimentali complesse.
SCARICA LA PRESENTAZIONE COMPLETA
William C. Summers (2014): “inventare i virus” e la riformulazione continua
La proposta storiografica di Summers non si colloca fuori dalla scienza; è un invito a guardare come le definizioni cambiano quando cambiano strumenti, problemi ritenuti centrali, standard di prova. L’evoluzione del significato di “virus” – da “agente di trasmissione delle malattie” a “assemblaggio molecolare con proprietà notevoli” – è letta come “riformulazione deliberata e continua” più che come accumulo lineare di fatti. Summers dichiara esplicitamente che la sua non è la storia “dell’accumulo trionfante di conoscenze” da parte di “eroici scienziati”, ma “l’esame della lotta continua per comprendere e organizzare osservazioni” che hanno “sfidato” e “reso obsolete” certezza spesso molto recenti. Per fare questo, chiede di considerare la scienza del passato “alle sue condizioni”, senza giudicarla con il metro del presente; e di considerare “il contesto e l’estensione delle conoscenze di sfondo” in un dato periodo.
In questa cornice, Summers riassume – in forma che qui rendiamo in prosa – cinque punti chiave. Primo, il concetto di virus “non è stato stabile” e “si è evoluto” dall’Ottocento in poi. Secondo, questa evoluzione non somiglia a una “scala” di fatti che si accumulano, ma a una “riformulazione continua” del concetto in base al “fuoco scientifico del momento”: crescita, metabolismo, composizione chimica, genetica, struttura fisica. Terzo, il concetto è stato “determinato in particolare dai progressi tecnologici” più che da una “comprensione” astratta, “teorica” dell’oggetto. Quarto, la risposta alla domanda “che cos’è un virus?” “dipende dal discorso scientifico in un dato periodo”. Quinto, il discorso sull’oggetto fisico “virus” “si basa sui problemi e le preoccupazioni specifici” del tempo più che su “un set fisso di caratteristiche intrinseche” note.
A fare da contrappunto, Summers ricorda due voci emblematiche della metà del secolo. Joseph Beard, nel 1945, scriveva che si era tessuto “un arazzo di concetti con tanta trama e poca ordito”: una metafora che, nel gergo della tessitura, indica una struttura con molte “trame” (idee, narrazioni) e pochi “orditi” (i fili longitudinali che danno tenuta). N. W. Pirie, nel 1949, si dichiarava “agnostico” sul fatto che i virus fossero “microbi o molecole”, e sottolineava che la variabilità della composizione chimica riportata per lo stesso virus era “incompatibile” con l’ipotesi “molecolare” intesa come “singola sostanza”. Non è l’ultima parola sul tema; è un promemoria che, anche nella “moderna” era di inizio seconda metà del secolo, il concetto non era ancora una forma perfettamente definita.
Postulati di Koch, definizioni negative e tecnologia: come gli strumenti cambiano i concetti
Tra XIX e XX secolo, la batteriologia si afferma non solo grazie agli “oggetti” che studia, ma soprattutto grazie agli strumenti che mette in campo: filtri, colture, microscopi, tecniche di colorazione. È curioso – e istruttivo – vedere quanto i concetti si pieghino agli strumenti. La “filtrabilità” – categoria tecnica, non ontologica – diventa per decenni il discrimine per distinguere “virus” e “batteri”. I “preparati” – sospensioni di tessuti, estratti, emulsioni – non sono un difetto, ma la condizione pratica del lavorare con entità che non si vedono e non si coltivano su mezzi inerti. La “coltivazione” – parola che richiama piastre e terreni solidi – non è, qui, crescita su mezzi lifeless, ma proliferazione all’interno di cellule vive, colture di tessuti che richiedono un’arte e una standardizzazione che arriverà pienamente solo nel secondo dopoguerra. La microscopia elettronica, poi, aprirà finestre nuove; le tecniche sierologiche – con tutti i loro trabocchetti – forniranno impronte immunologiche preziose ma ambigue; la rivoluzione genetica schiaccerà l’attenzione su “sequenze”, “codici”, “ribosomi”, “tRNA”.
Non sorprende che Lwoff definisca i virus per “assenze” in sintonia con un’epoca in cui si possono testare, in modo affidabile, i tratti molecolari più che morfologici. Non sorprende che Rivers si appoggi a “preparati” e “filtri” perché sono le mani e gli occhi del suo tempo. Non sorprende che Summers inviti a leggere il concetto come “prodotto del discorso scientifico” di un’epoca. È la stessa ragione per cui la frase “in un senso reale, un virus è ciò che i virologi dicono che sia” non è un insulto alla verità, ma un invito a riconoscere che le definizioni operative nascono dalle possibilità e dai limiti degli strumenti. E si aggiornano quando gli strumenti cambiano.
Che cosa sostiene questa ricostruzione – e che cosa non pretende di sostenere
A questo punto è utile dire con chiarezza che cosa, sulla base delle fonti citate, sostiene questa ricostruzione, e che cosa non pretende di sostenere. Sostiene che il concetto di “virus” è stato storicamente instabile e oggetto di riformulazioni successive, come mostrano le analisi di Rivers (1932) e le storiografie di van Helvoort (1996) e Summers (2014), oltre alle definizioni genetiche di Lwoff (1953–1957–1971) e al suo monito del 1991. Sostiene che, nella prima metà del Novecento, le difficoltà metodologiche – preparati impuri, stime indirette, colture non standardizzate, strumenti non ancora maturi – hanno reso arduo “definire in positivo” che cosa fosse un virus, spingendo a definizioni per differenza (“in negativo”). Sostiene che la storia della virologia non è stata una scaletta lineare di trionfi, ma anche una lotta per organizzare osservazioni eterogenee, aggiornando nel frattempo le categorie concettuali. Sostiene che il confine tra endogeno ed esogeno – specie nel caso dei batteriofagi – ha mostrato limiti e ambiguità interessanti, tanto da costringere a riformulare le definizioni. Sostiene, infine, che le definizioni “per assenza”, per quanto operative e spesso potenti, sono concettualmente fragili e chiedono di essere usate con consapevolezza dei loro limiti.
Non sostiene, invece, che i virus “non esistano” o che la virologia sia “pseudoscienza”: riporta e discute posizioni storiche e storiografiche – incluse quelle più critiche – senza trasformarle in fatti dimostrati, né nel senso del trionfalismo, né in quello del cinismo. Non sostiene che le tecniche moderne non abbiano prodotto evidenze decisive: semplicemente, questo racconto si concentra sugli autori e sul periodo in oggetto, restituendo l’incertezza concettuale e pratica di un’epoca in cui le parole cercavano ancora il loro oggetto. E non fornisce consigli medici o giudizi su pratiche cliniche: la scelta è deliberata e dichiarata.
Perché la purificazione conta (ancora)
Tra i tanti moniti metodologici di Rivers, quello sulla purificazione ha un valore che va oltre il suo tempo. “Le emulsioni contenenti virus consistono per lo più di sostanze non collegate con l’agente attivo in sé”, scriveva. “È naturale” tentare di ottenere i virus in stato “puro o relativamente puro”. Senza preparati purificati, le stime di dimensioni e carica elettrica rischiano di fotografare “il miscuglio”, non l’agente. Le osservazioni immunologiche, senza preparati più puliti, rischiano di dire molto sulle proteine della cellula ospite o su adsorbimenti aspecifici; poco, con certezza, sulla particella d’interesse.
Non è un “capriccio” epistemologico. È una necessità che attraversa un secolo di pratica di laboratorio: quando si lavora con entità che vivono solo in contatto con cellule e si muovono a scale dove “pochi nanometri” fanno la differenza, “purezza assoluta” è un ideale asintotico. Si possono raggiungere altissimi livelli di purezza operativa; ma la domanda “che cosa ho davvero nel mio tubo?” resta il filo che guida tra misure e interpretazioni. Non è un caso che nel 2020, in un’epoca in cui filtri, gradienti e colonne hanno raggiunto raffinatezze impensabili negli anni Trenta, un articolo possa scrivere che “a oggi, un metodo affidabile che possa garantire davvero una separazione completa non esiste”. È un promemoria contemporaneo di un problema antico.
Una parentesi lessicale: “filtrabile”, “preparato”, “coltivazione”
Leggere le parole di ieri con le categorie di oggi genera malintesi. “Filtrabile”, nella prima virologia, non dice una “natura” ontologica; dice una risposta sperimentale: l’agente attraversa un filtro che trattiene batteri noti. È, insieme, un indizio e un limite. “Preparato” non è una genericità: dice che si lavora con sospensioni dove la parte del leone la fanno proteine, membrane, frammenti cellulari; e che, nel mezzo, si spera vi sia l’agente che interessa. “Coltivazione”, per un virus, non è crescita autonoma su mezzi inerti: richiede cellule vive, tessuti, specificità che hanno un peso sia operativo sia concettuale. “Immunità” e “anticorpi neutralizzanti” sono categorie intense, ma se usate come “prove ontologiche” possono produrre circolarità definitorie: si rischia di costruire definizioni sull’impronta lasciata nel sistema ospite più che sull’agente in sé. Lo stesso vale per “enzima”, “molecola”, “protozoo”, “organismo”: parole che nel discorso dell’epoca indicavano più un “modo di leggere” gli indizi che una natura provata.
Perché questa storia conta oggi
Guardare alla storia del concetto di “virus” non è un esercizio antiquario. Dice almeno quattro cose che hanno valore anche nel presente. Prima: le categorie scientifiche non sono “date una volta per tutte”, ma risposte storiche a problemi reali; si costruiscono su misure, strumenti, linguaggi che cambiano. Seconda: definire “per assenza” funziona in laboratorio, ma va maneggiato con cautela in filosofia della scienza; un’assenza è una cornice, non un’essenza. Terza: distinguere tra fatti, strumenti e interpretazioni rende più robuste le polemiche pubbliche; evita tanto la retorica delle “verità eterne” quanto l’impulso a screditare ciò che non è definito alla perfezione. Quarta: sapere che per decenni “virus” ha significato cose non identiche non toglie nulla alla serietà della ricerca; semmai, aumenta la capacità di leggere criticamente nuove “ridefinizioni” – incluse quelle dettate dal profluvio di sequenze nella stagione genomica.
In filigrana, resta una lezione di metodo. Rivers, nel 1932, invitava a non scegliere “la via più facile” – accettare che i virus siano “organismi minuti” – solo perché “meglio si adatta all’esperienza del giorno”. “La via più facile” può non essere “quella giusta”. L’eccesso di scetticismo è sterile quanto la fretta di accettare “prove presuntive”. È saggezza che non invecchia. E che si ricongiunge al monito di Lwoff nel 1991: attenzione a non ridurre tutto a “sequenze”. La riduzione è utile; ma se perde “l’anima” – il nodo tra informazione, contesto e fenomeni – la definizione si fa piatta, e l’oggetto sbiadisce.
La storia, insomma, non toglie realtà ai fenomeni che chiamiamo “virali”. Racconta piuttosto la faticosa invenzione – e reinvenzione – della categoria “virus”, in un percorso di tentativi, correzioni e ridefinizioni che ha visto i suoi protagonisti riconoscere con franchezza i limiti, impostare criteri, e cambiare idea quando gli strumenti e le domande lo chiedevano. È in quella franchezza – più che nelle metafore eroiche – che sta forse il tratto più affidabile di una disciplina che, quando si interroga sui propri fondamenti, dimostra di avere spalle larghe.
Bibliografia e materiali consultati
- Thomas Rivers, “No viruses have been found multiplying free in nature”, memoria orale: Tom Rivers: reflections on a life in medicine and science. https://www.fulcrum.org/concern/monographs/kp78gg755
- Ton van Helvoort, When Did Virology Start? ASM News (1996). https://www.academia.edu/1460832/When_did_virology_start_ASM_News_62_March_1996_142_5
- William C. Summers, Inventing Viruses (2014). https://pubmed.ncbi.nlm.nih.gov/26958713/
- André Lwoff, Factors Influencing the Evolution of Viral Diseases (1953) – discussione su batteriofagi e definizioni. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC180777/
- Recensione 1991 con riferimento al monito di Lwoff sulla “tendenza a diventare sequenze”. https://www.cambridge.org/core/services/aop-cambridge-core/content/view/E0E7002A2AEECD1ACA82F4E40ED59645/S0025727300057975a.pdf/alfred-grafe-a-history-of-experimental-virology-transl-elvira-rechendorf-berlin-new-york-and-london-springer-verlag-1991-pp-xi-343-dm-9800-3-540-51925-4.pdf
- Milton W. Taylor, “What is a virus?” (2014): riflessioni su definizioni negative e su Lwoff 1971. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC7122971/
- André Lwoff, From Protozoa to Bacteria and Viruses. Fifty Years with Microbes (1971). https://pubmed.ncbi.nlm.nih.gov/4340372/
- Sulla difficoltà di separazione completa virus/componenti dell’ospite (2020). https://www.ncbi.nlm.nih.gov/pmc/articles/PMC7291340/pdf/viruses-12-00571.pdf
- Thomas M. Rivers (1932), The Nature of Viruses (riproduzione). https://viroliegyhome.files.wordpress.com/2023/11/rivers1932.pdf
- Nota storica correlata su Nature (link citato in fonte). https://www.nature.com/articles/145853d0
Nota editoriale
Questo testo è una rielaborazione divulgativa. Non costituisce in alcun modo una consulenza medica.

Lasciate il vostro commento